À quoi sert ce calculateur
Titrer un peptide consiste à ajouter un acide fort ou une base forte jusqu'à ce que chaque groupement titrable de la molécule ait réagi. Ce calculateur détermine le point d'équivalence de ce titrage : soit le nombre de millilitres de titrant de concentration connue qu'il faut ajouter, soit la concentration que doit avoir le titrant pour atteindre l'équivalence dans un volume ajouté fixé. Il s'applique à toute solution de peptide ou de protéine et ne dépend d'aucune réglementation nationale.
La formule
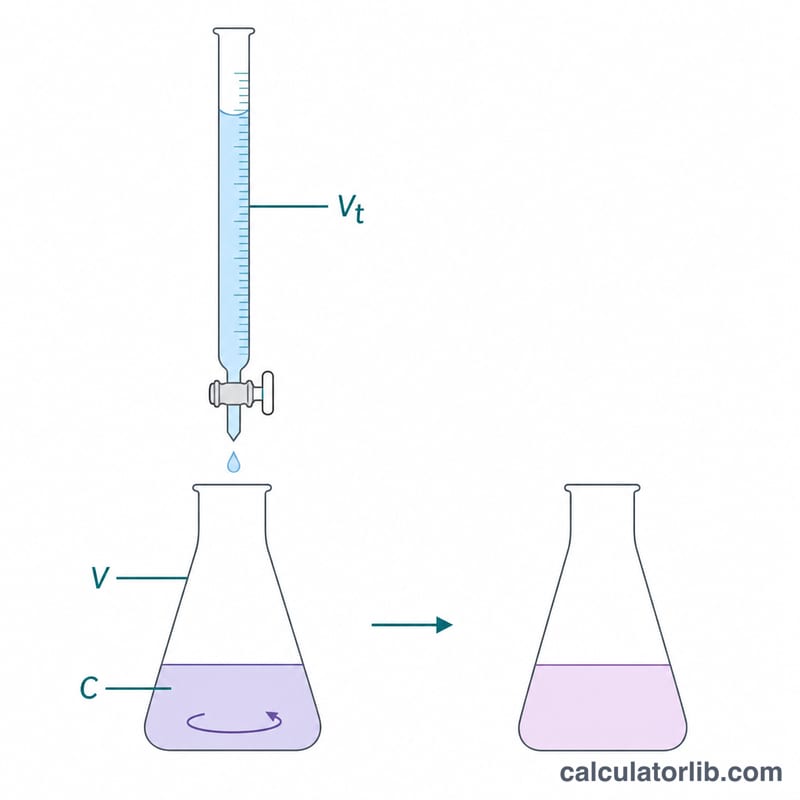
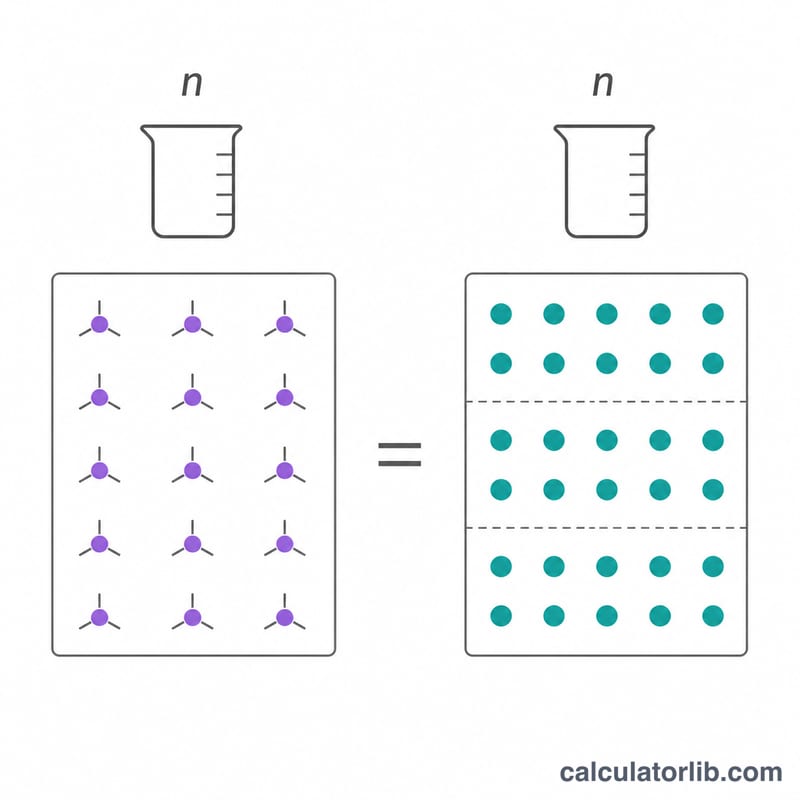
Le point d'équivalence relève de la pure stœchiométrie : le nombre de moles de titrant égale le nombre de moles de groupements titrables. Avec \(C_p\) = concentration du peptide en mM, \(V_s\) = volume de l'échantillon en mL, \(n\) = nombre de groupements titrables par peptide (équivalents) et \(C_t\) = concentration du titrant en mM :
$$V_t = \frac{C_p \times V_s \times n}{C_t}$$Comme le produit d'une millimolarité par un millilitre donne des micromoles, les unités se simplifient d'elles-mêmes et \(V_t\) s'exprime bien en mL. En résolvant la même identité par rapport à la concentration, on obtient \(C_t = \frac{C_p \times V_s \times n}{V_t}\). Déterminez \(n\) à partir de la séquence : les extrémités alpha-aminée et alpha-carboxylique libres, auxquelles s'ajoutent les chaînes latérales ionisables (Asp, Glu, His, Lys, Arg, Cys, Tyr) que votre titrant atteindra réellement dans la plage de pH balayée.
Exemple chiffré
Un échantillon de 10 mL d'un peptide à 2 mM portant 3 groupements titrables est titré par de la soude (NaOH) à 50 mM. La quantité de peptide vaut \(2 \times 10 = 20\,\mu\text{mol}\), les équivalents à neutraliser sont donc \(20 \times 3 = 60\,\mu\text{mol}\) :
$$V_t = \frac{2 \times 10 \times 3}{50} = 1.2\,\text{mL}$$Le volume total à l'équivalence atteint 11,2 mL, ce qui dilue le peptide à environ 1,79 mM.
Termes et variables clés
Le calcul du point d'équivalence utilise cinq grandeurs. Garder leurs unités correctes (mM et mL, qui se multiplient pour donner des micromoles) rend l'arithmétique triviale.
| Symbole | Terme | Définition et unités |
|---|---|---|
| \(C_p\) | Concentration en peptide | Concentration molaire du peptide dans l'échantillon, en millimolaire (mM = mmol/L). Si vous partez d'une masse pesée, obtenez-la à partir de masse ÷ masse molaire ÷ volume. |
| \(V_s\) | Volume de l'échantillon | Volume de la solution de peptide placée dans le récipient de titrage, en millilitres (mL). Le solvant ajouté uniquement pour immerger l'électrode ne fait pas partie de \(V_s\) pour le comptage des moles, bien qu'il dilue la solution finale. |
| \(n\) | Équivalents par peptide | Comptage sans dimension des protons titratables (ou sites réactifs) échangés par molécule de peptide sur la plage de pH que vous titrez réellement. Un peptide avec une extrémité C libre, une extrémité N libre et un Asp a \(n = 3\) pour un balayage complet acide-vers-base. |
| \(C_t\) | Concentration du titrant | Concentration molaire du titrant standardisé (par exemple NaOH ou HCl), en mM. |
| \(V_t\) | Volume du titrant | Volume de titrant distribué pour atteindre le point d'équivalence, en mL — l'inconnue primaire. |
Point d'équivalence vs point d'équivalent observé. Le point d'équivalence est l'idéal stœchiométrique : les moles de titrant ajoutées sont exactement égales aux moles de sites titratables, \(C_t V_t = C_p V_s n\). Le point d'équivalent observé est ce que vous observez réellement — un changement de couleur d'un indicateur ou l'inflexion dans une trace d'électrode de pH. Les deux diffèrent par l'erreur de titrage ; avec un indicateur bien appairé ou une recherche d'inflexion basée sur la dérivée, la différence est généralement petite, mais le calculateur renvoie le point d'équivalence, et non une lecture d'équivalent observé prédite.
Groupe titrable (ionisable). Tout groupe chimique du peptide qui gagne ou perd un proton dans la fenêtre de pH scannée : le terminus α-amino, le terminus α-carboxyle, et les chaînes latérales d'Asp, Glu, His, Cys, Tyr, Lys et Arg. Les terminus bloqués par amide (peptides avec bouchon Ac- ou -NH₂) ne sont pas titratables et ne doivent pas être comptés.
Équivalent. Une mole de protons transférés (dans le travail acide-base). Un peptide portant trois protons titratables fournit trois équivalents par mole, ce que le facteur \(n\) encode exactement.
Normalité vs molarité. La molarité compte les moles de soluté par litre ; la normalité compte les équivalents par litre. Pour les titrants monoprotiques tels que NaOH ou HCl les deux sont numériquement identiques. Pour un titrant polyprotique, ce n'est pas le cas : 0,1 M H₂SO₄ est 0,2 N, et 0,1 M Ba(OH)₂ est 0,2 N. Ce calculateur fonctionne en molarité, donc si un titrant est étiqueté en normalité, convertissez d'abord — \(C_t(\text{mM}) = 1000 \times N / z\), où \(z\) est le nombre de protons échangeables par molécule de titrant.
Point isoélectrique (pI). Le pH auquel le peptide porte une charge nette nulle. Dans une courbe de titrage, c'est le pH à mi-chemin entre les valeurs de pKa encadrant l'espèce neutre, et c'est une vérification utile : un peptide riche en Asp/Glu devrait montrer un pI faible et consommer beaucoup plus de base que d'acide.
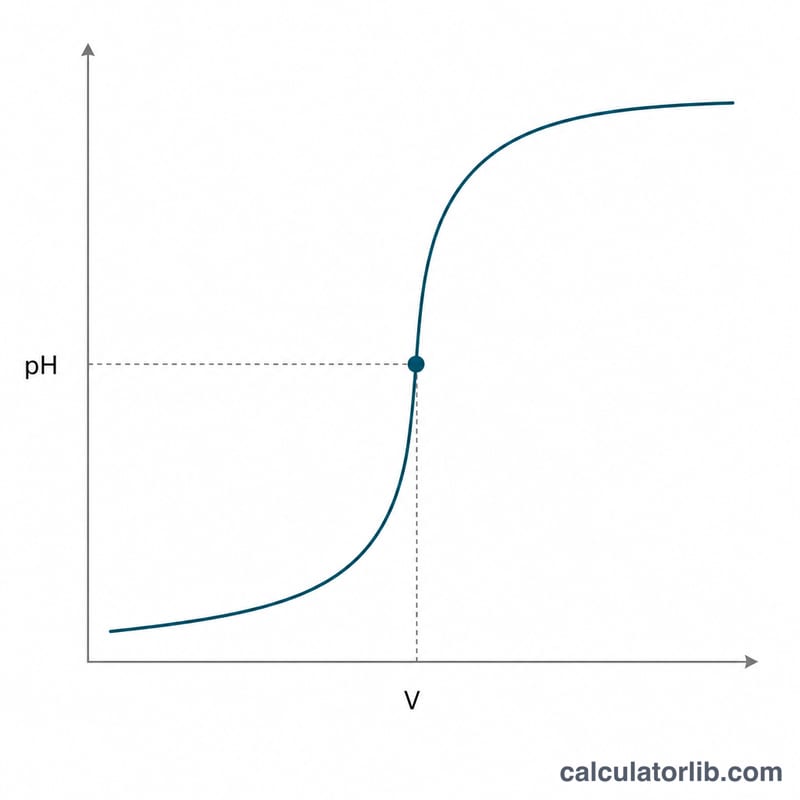
Région de tampon et point d'inflexion. Près de chaque pKa le pH change lentement à mesure que le titrant est ajouté — la région de tampon, centrée sur le point de demi-équivalence où pH = pKa. Entre les régions de tampon la courbe s'accentue ; le point le plus abrupt (maximum de \(dpH/dV\), zéro de la dérivée seconde) est l'inflexion utilisée pour localiser expérimentalement un point d'équivalence. Les peptides avec des valeurs de pKa plus proches d'environ 2 unités donnent des inflexions fusionnées, mal résolues.
Titrant standardisé. Un titrant dont la concentration a été vérifiée par rapport à une norme primaire (phtalate acide de potassium pour la base, tris ou carbonate de sodium pour l'acide) plutôt que de faire confiance à l'étiquette. NaOH absorbe le CO₂ atmosphérique et dérive, donc une \(C_t\) non standardisée est la source la plus courante d'une \(V_t\) systématiquement incorrecte.
Groupes titratables et valeurs de pKa pour compter n
Le facteur d'équivalents \(n\) n'est pas une propriété que vous recherchez pour l'ensemble du peptide — vous le construisez en comptant les groupes ionisables qui changent réellement l'état de protonation dans la fenêtre de pH que vous scannez. Le tableau liste les valeurs de pKa de référence standard, qui sont les valeurs mesurées pour les acides aminés libres et sont celles citées dans la plupart des textes de biochimie.
| Groupe | pKa typique | Changement de charge lors de l'ajout de base forte | Titré lors d'un balayage pH 2 → 11 ? |
|---|---|---|---|
| Terminus α-carboxyle (–COOH) | ≈ 2,0–3,5 | 0 → −1 | Oui (généralement déjà partiellement déprotoné à pH 2, donc commencez bas) |
| Chaîne latérale d'Asp (β-carboxyle) | ≈ 3,9 | 0 → −1 | Oui |
| Chaîne latérale d'Glu (γ-carboxyle) | ≈ 4,3 | 0 → −1 | Oui |
| Imidazole d'His | ≈ 6,0 | +1 → 0 | Oui |
| Thiol de Cys | ≈ 8,3 | 0 → −1 | Oui (thiol libre seulement ; Cys lié par un pont disulfure n'est pas titrable) |
| Terminus α-amino (–NH₃⁺) | ≈ 9,0–9,6 | +1 → 0 | Oui |
| Phénol de Tyr | ≈ 10,1 | 0 → −1 | Partiellement — nécessite pH ≳ 11,5 pour une conversion complète |
| Amine ε de Lys | ≈ 10,5 | +1 → 0 | Partiellement — seulement ~76 % déprotoné à pH 11 |
| Guanidinium d'Arg | ≈ 12,5 | +1 → 0 | Non — normalement hors limites et exclu de \(n\) |
Mise en garde importante. Ce sont des valeurs de référence pour les acides aminés libres. À l'intérieur d'un peptide, le même groupe se décale généralement d'environ ±1 unité de pH — parfois plus — en raison du squelette voisin, des interactions de charge-charge, de la liaison hydrogène et de l'enfouissement dans les peptides structurés. Les groupes terminaux se décalent le plus : un α-carboxyle dans un peptide est généralement plus proche de 3,1–3,6 et un α-amino plus proche de 7,7–8,5. Utilisez le tableau comme aide pour compter \(n\), et non comme source de positions de courbe de titrage exactes.
Comptage réalisé. Prenez le tripeptide H-Asp-Ala-Lys-OH (DAK) avec les deux terminus libres, titré avec du NaOH standardisé de pH 2 à pH 11 :
- α-carboxyle du Lys terminal C — compte, +1
- Chaîne latérale d'Asp — compte, +1
- α-amino du Asp terminal N — compte, +1
- Amine ε de Lys (pKa ≈ 10,5) — seulement partiellement titré à pH 11 ; incluez-le (+1) seulement si vous balayez à pH ≈ 12, sinon laissez-le de côté
- Ala — pas de chaîne latérale ionisable, ne contribue rien
Donc \(n = 3\) pour un titrage pH 2 → 11 et \(n = 4\) pour un balayage réalisé au-delà de pH 12. Si la même séquence était fournie acétylée et avec une amidation au terminus C (Ac-DAK-NH₂), les deux terminus seraient bloqués et \(n\) chuterait à 1 (Asp seulement) sur la fenêtre pH 2 → 11. Confirmez toujours la chimie des terminus sur le certificat d'analyse du fournisseur avant de choisir \(n\).
Comment calculer le point d'équivalence à la main
L'ensemble du calcul est un équilibre stœchiométrique — les moles de titrant égalent les moles de protons titratables :
$$C_t \times V_t = C_p \times V_s \times n \qquad\Longrightarrow\qquad V_t = \frac{C_p \times V_s \times n}{C_t}$$
- Convertissez la quantité de peptide en mM. Si vous avez commencé à partir d'un solide pesé, utilisez $$C_p(\text{mM}) = \frac{ \text{masse (mg)}}{MW\,(\text{g/mol}) \times V_s(\text{mL})} \times 1000$$ Utilisez la teneur en peptide net du peptide lorsque connue — les peptides lyophilisés portent des contre-ions (TFA, acétate) et de l'eau résiduelle, donc la masse pesée surestime généralement le vrai peptide de 10–30 %.
- Calculez la quantité de peptide en micromoles. \(n_{pep} = C_p \times V_s\). Parce que 1 mM × 1 mL = 1 µmol, aucune conversion d'unité n'est nécessaire.
- Déterminez \(n\) à partir de la séquence et de la fenêtre de pH. Comptez les terminus libres plus les chaînes latérales ionisables dont la pKa se situe dans la plage que vous balayerez réellement (voir le tableau pKa ci-dessus). Excluez les terminus bloqués, les cysteines liées par un pont disulfure et, dans un balayage aqueux normal, l'arginine.
- Calculez les micromoles de titrant requises. \(n_{eq} = C_p \times V_s \times n\).
- Résolvez pour l'inconnue. Divisez par la concentration du titrant pour obtenir le volume, \(V_t = n_{eq}/C_t\) ; ou divisez par un volume à distribuer fixe pour obtenir la concentration que vous devez préparer, \(C_t = n_{eq}/V_t\).
- Vérifiez les unités. mM × mL = µmol, et µmol ÷ mM = mL. Si votre réponse est décalée d'un facteur de 1000, vous avez très probablement mélangé M avec mM ou L avec mL.
- Calculez le volume et la dilution à l'équivalence. \(V_{total} = V_s + V_t\), et la concentration de peptide diluée est \(C_{final} = C_p V_s / V_{total}\). Le facteur de dilution \(V_{total}/V_s\) importe si vous envisagez une lecture spectroscopique sur la solution titrée.
- Vérification de bon sens que \(V_t\) est pratique. Visez un volume de titrant qui utilise une bonne fraction de la burette — environ 20–80 % de sa capacité nominale, ou au moins quelques centaines de microlitres sur un microtitrateur automatisé. Si \(V_t\) s'avère inférieur à environ 0,1 mL, diluez le titrant ; s'il dépasse le volume de la burette ou dilue l'échantillon de plus d'environ deux fois, concentrez le titrant ou réduisez \(V_s\).
Exemple réalisé
Vous dissolvez 12,0 mg d'un peptide de masse molaire 1200 g/mol dans 5,00 mL d'eau et titrez avec du NaOH standardisé de 50 mM. Le peptide a un terminus C libre, un terminus N libre et un résidu Glu, et vous balayez pH 2 → 11, donc \(n = 3\).
- Quantité de peptide : \(12,0 \div 1200 = 0,0100\) mmol = 10,0 µmol.
- Concentration : \(C_p = 10,0\ \mu\text{mol} \div 5,00\ \text{mL} = 2,00\) mM.
- Équivalents nécessaires : \(n_{eq} = 2,00 \times 5,00 \times 3 = 30,0\) µmol d'OH⁻.
- Volume du titrant : $$V_t = \frac{2,00\ \text{mM} \times 5,00\ \text{mL} \times 3}{50\ \text{mM}} = \frac{30,0\ \mu\text{mol}}{50\ \text{mM}} = 0,600\ \text{mL}$$
Le point d'équivalence est atteint après 0,600 mL de 50 mM NaOH. Le volume total à l'équivalence est \(5,00 + 0,600 = 5,60\) mL, et la concentration de peptide diluée est \(C_{final} = 10,0 \div 5,60 = 1,786\) mM — un facteur de dilution de 1,12. Notez que 0,6 mL est une petite lecture sur une burette de 50 mL ; une burette micro de 1 mL ou 2,5 mL, ou un titrant de 10 mM donnant \(V_t = 3,00\) mL, serait distribué plus précisément.
Point d'équivalence dans les scénarios de titrage typiques
Chaque ligne ci-dessous suit \(V_t = C_p V_s n / C_t\), avec \(V_{total} = V_s + V_t\) et \(C_{final} = C_p V_s / V_{total}\). Les lignes 1–3 sont le même échantillon de peptide titré sur différentes fenêtres de pH (différents \(n\)), ce qui est la source la plus importante de confusion dans la pratique.
| Scénario | Cp (mM) | Vs (mL) | n | Ct (mM) | Vt (mL) | Volume total (mL) | Cfinal (mM) |
|---|---|---|---|---|---|---|---|
| Cas standard : 3 groupes titratables, 50 mM NaOH | 2 | 10 | 3 | 50 | 1,200 | 11,200 | 1,786 |
| Même échantillon, terminus bloqués — seulement 1 groupe titré | 2 | 10 | 1 | 50 | 0,400 | 10,400 | 1,923 |
| Même échantillon, peptide acide balayé au-delà de pH 12 — 5 groupes | 2 | 10 | 5 | 50 | 2,000 | 12,000 | 1,667 |
| Échantillon dilué, titrant dilué (paire assortie) | 0,2 | 25 | 2 | 10 | 1,000 | 26,000 | 0,192 |
| Échantillon concentré à petit volume, titrant de 100 mM | 20 | 5 | 4 | 100 | 4,000 | 9,000 | 11,111 |
| Titrant beaucoup trop fort — distribution impratique | 0,5 | 10 | 2 | 1000 | 0,010 | 10,010 | 0,4995 |
Lecture du tableau
- \(n\) met à l'échelle \(V_t\) linéairement. Les lignes 1–3 diffèrent seulement dans le comptage des équivalents, et \(V_t\) passe de 0,400 à 2,000 mL. Mal compter un seul groupe ionisable sur un tripeptide est une erreur de 33 % dans le volume d'équivalence prédit, ce qui est bien plus grande que toute erreur réaliste de burette.
- Associez la force du titrant à la charge de l'échantillon. La ligne dilue (0,2 mM en 25 mL) contient seulement 10 µmol de protons titratables et nécessite un titrant de 10 mM pour donner une lecture lisible de 1,000 mL ; la ligne concentrée porte 400 µmol et nécessite 100 mM pour rester sous 5 mL. Une règle empirique utile est de choisir \(C_t \approx C_p \times n \times V_s / V_{target}\), avec \(V_{target}\) défini sur une lecture confortable de burette.
- La dernière ligne est un mode de défaillance, pas une recette. Un titrant de 1 M contre 10 µmol de protons nécessite 10 µL — en dessous de la résolution de la plupart des burettes manuelles, et une seule goutte égarée (~50 µL) dépasserait le point d'équivalence de cinq fois. Diluer ce titrant 100 fois à 10 mM déplace \(V_t\) à 1,000 mL et rétablit une précision utilisable.
- Surveillez la dilution. La ligne n = 5 dilue le peptide de 2 mM à 1,667 mM (un facteur de 1,20) au moment où l'équivalence est atteinte. Si vous envisagez de mesurer l'absorbance, la fluorescence ou un essai ultérieur sur la solution titrée, corrigez en utilisant \(V_{total}/V_s\) plutôt que de supposer la concentration initiale.
Questions fréquentes
Le point d'équivalence correspond-il à pH 7 ? Non. Pour un peptide titré par une base forte, le point d'équivalence se situe généralement nettement au-dessus de 7, car la base conjuguée est faiblement basique ; servez-vous du volume calculé comme valeur cible et lisez le pH réel sur votre courbe.
Et si je ne connais que la masse, pas la molarité ? Divisez la masse en milligrammes par la masse molaire du peptide en g/mol pour obtenir des micromoles, puis divisez par le volume de l'échantillon en mL pour obtenir des mM.
Pourquoi mon point de fin mesuré dépasse-t-il la prévision ? Les sels du tampon, le CO2 dissous et les contre-ions présents dans un peptide lyophilisé consomment tous du titrant. Réalisez un titrage à blanc sur le tampon seul et soustrayez-le.