Qué hace esta calculadora
Valorar un péptido consiste en añadir un ácido o una base fuerte hasta que todos los grupos valorables de la molécula hayan reaccionado. Esta calculadora determina el punto de equivalencia de esa valoración: bien cuántos mililitros de un valorante de concentración conocida debes añadir, bien qué concentración necesita tener el valorante para alcanzar la equivalencia en un volumen añadido fijo. Sirve para cualquier disolución de péptido o proteína y no depende de normativas de ningún país en concreto.
La fórmula
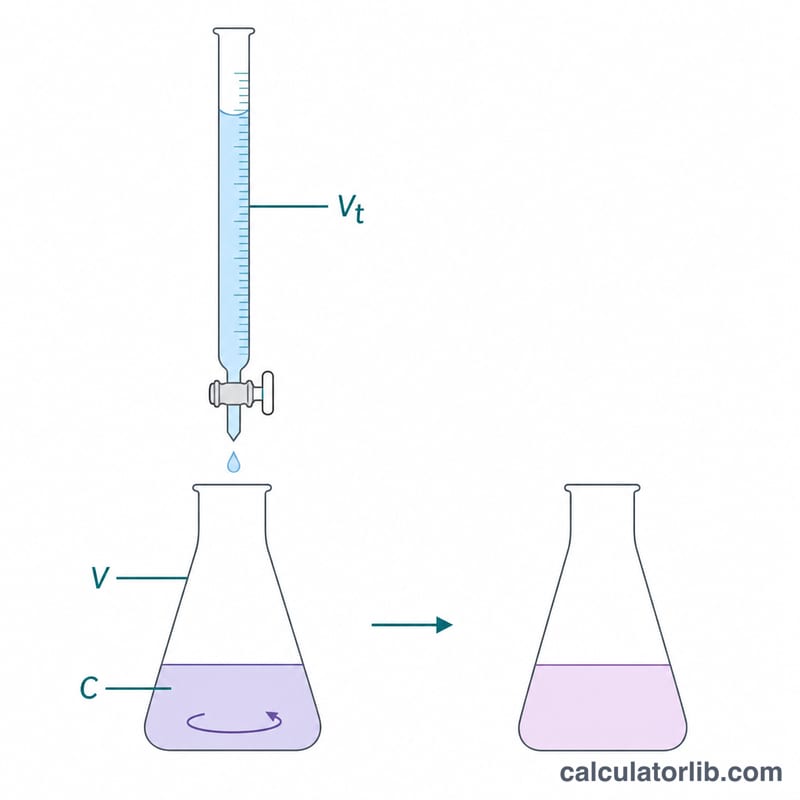
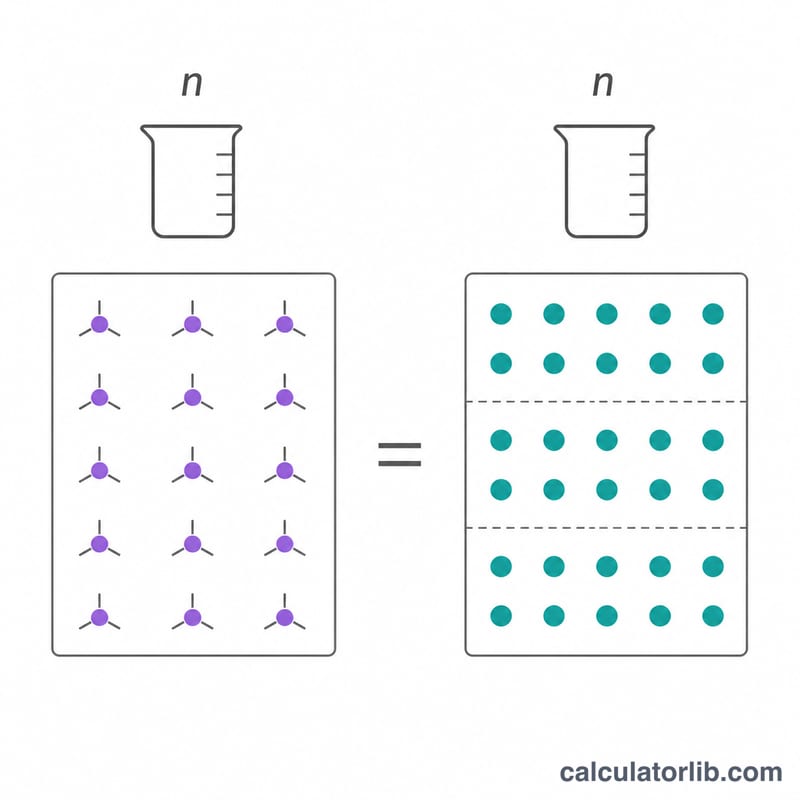
El punto de equivalencia es estequiometría pura: los moles de valorante igualan a los moles de grupos valorables. Siendo \(C_p\) = concentración del péptido en mM, \(V_s\) = volumen de muestra en mL, \(n\) = grupos valorables por péptido (equivalentes) y \(C_t\) = concentración del valorante en mM:
$$V_t = \frac{C_p \times V_s \times n}{C_t}$$Como milimolar por mililitro da micromoles, las unidades se cancelan de forma limpia y \(V_t\) resulta en mL. Al despejar la misma identidad para la concentración se obtiene \(C_t = \frac{C_p \times V_s \times n}{V_t}\). El valor de \(n\) se cuenta a partir de la secuencia: los extremos alfa-amino y alfa-carboxilo libres más las cadenas laterales ionizables (Asp, Glu, His, Lys, Arg, Cys, Tyr) a las que tu valorante realmente llegue dentro del intervalo de pH recorrido.
Ejemplo resuelto
Una muestra de 10 mL de un péptido 2 mM con 3 grupos valorables se valora con NaOH 50 mM. La cantidad de péptido es \(2 \times 10 = 20\,\mu\text{mol}\), de modo que los equivalentes que hay que neutralizar son \(20 \times 3 = 60\,\mu\text{mol}\):
$$V_t = \frac{2 \times 10 \times 3}{50} = 1.2\,\text{mL}$$El volumen total en la equivalencia es de 11,2 mL, lo que diluye el péptido hasta unos 1,79 mM.
Términos y Variables Clave
El cálculo del punto de equivalencia utiliza cinco cantidades. Mantener sus unidades rectas (mM y mL, que se multiplican para dar micromoles) es lo que hace que la aritmética sea trivial.
| Símbolo | Término | Definición y unidades |
|---|---|---|
| \(C_p\) | Concentración de péptido | Concentración molar del péptido en la muestra, en milimolar (mM = mmol/L). Si comenzó a partir de una masa pesada, obténgala de masa ÷ peso molecular ÷ volumen. |
| \(V_s\) | Volumen de muestra | Volumen de solución de péptido colocado en el recipiente de titulación, en mililitros (mL). El disolvente añadido solo para sumergir el electrodo no es parte de \(V_s\) para el recuento de moles, aunque sí diluye la solución final. |
| \(n\) | Equivalentes por péptido | Recuento adimensional de protones titulables (o sitios reactivos) intercambiados por molécula de péptido en el rango de pH que realmente titula. Un péptido con un C-terminal libre, un N-terminal libre y un Asp tiene \(n = 3\) para un barrido ácido-base completo. |
| \(C_t\) | Concentración del titulante | Concentración molar del titulante estandarizado (p. ej., NaOH o HCl), en mM. |
| \(V_t\) | Volumen de titulante | Volumen de titulante entregado para alcanzar el punto de equivalencia, en mL — la incógnita principal. |
Punto de equivalencia vs punto de viraje. El punto de equivalencia es el ideal estequiométrico: los moles de titulante añadido son exactamente iguales a los moles de sitios titulables, \(C_t V_t = C_p V_s n\). El punto de viraje es lo que realmente se observa — un cambio de color de un indicador o la inflexión en un trazo del electrodo de pH. Los dos difieren por el error de titulación; con un indicador bien emparejado o una búsqueda de inflexión basada en derivadas la diferencia suele ser pequeña, pero la calculadora devuelve el punto de equivalencia, no una lectura de punto de viraje predicha.
Grupo titulable (ionizable). Cualquier grupo químico en el péptido que gana o pierde un protón dentro de la ventana de pH que se escanea: el terminal α-amino, el terminal α-carboxilo, y las cadenas laterales de Asp, Glu, His, Cys, Tyr, Lys y Arg. Los terminales bloqueados por amida (péptidos con tapa Ac- o -NH₂) no son titulables y no deben contarse.
Equivalente. Un mol de protones transferidos (en trabajo ácido-base). Un péptido que lleva tres protones titulables proporciona tres equivalentes por mol, que es exactamente lo que el factor \(n\) codifica.
Normalidad vs molaridad. La molaridad cuenta moles de soluto por litro; la normalidad cuenta equivalentes por litro. Para titulantes monoproticos como NaOH o HCl los dos son numéricamente idénticos. Para un titulante poliprótico no lo son: 0,1 M H₂SO₄ es 0,2 N, y 0,1 M Ba(OH)₂ es 0,2 N. Esta calculadora funciona en molaridad, así que si un titulante se etiqueta en normalidad, convierta primero — \(C_t(\text{mM}) = 1000 \times N / z\), donde \(z\) es el número de protones intercambiables por molécula de titulante.
Punto isoeléctrico (pI). El pH al que el péptido tiene carga neta cero. En una curva de titulación es el pH intermedio entre los valores de pKa que flanquean la especie neutra, y es una comprobación útil: un péptido rico en Asp/Glu debería mostrar un pI bajo y consumir mucha más base que ácido.
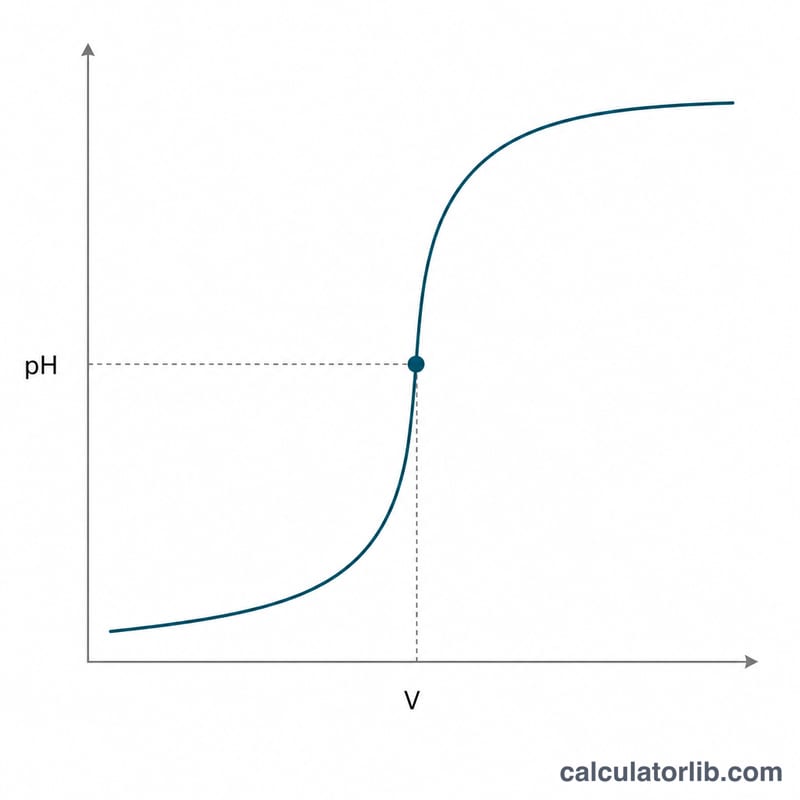
Región de amortiguación e inflexión. Cerca de cada pKa el pH cambia lentamente a medida que se añade titulante — la región de amortiguación, centrada en el punto de semi-equivalencia donde pH = pKa. Entre regiones de amortiguación la curva se hace más pronunciada; el punto más pronunciado (máximo de \(dpH/dV\), cero de la segunda derivada) es la inflexión usada para localizar un punto de equivalencia experimentalmente. Los péptidos con valores de pKa más cercanos que aproximadamente 2 unidades dan inflexiones fusionadas y mal resueltas.
Titulante estandarizado. Un titulante cuya concentración ha sido verificada contra un estándar primario (ftalato ácido de potasio para base, tris o carbonato de sodio para ácido) en lugar de confiarse en la etiqueta. El NaOH absorbe CO₂ atmosférico y se desplaza, así que un \(C_t\) no estandarizado es la fuente más común de un \(V_t\) sistemáticamente incorrecto.
Grupos Titulables y Valores de pKa para Contar n
El factor de equivalentes \(n\) no es una propiedad que busque para el péptido completo — lo construye contando los grupos ionizables que realmente cambian el estado de protonación dentro de la ventana de pH que escanea. La tabla enumera los valores de pKa de referencia estándar, que son los valores medidos para los aminoácidos libres y son los que se citan en la mayoría de textos de bioquímica.
| Grupo | pKa típico | Cambio de carga al añadir base fuerte | ¿Titulado dentro de un barrido de pH 2 → 11? |
|---|---|---|---|
| Terminal α-carboxilo (–COOH) | ≈ 2,0–3,5 | 0 → −1 | Sí (usualmente ya parcialmente desprotonado en pH 2, así que comience bajo) |
| Cadena lateral de Asp (β-carboxilo) | ≈ 3,9 | 0 → −1 | Sí |
| Cadena lateral de Glu (γ-carboxilo) | ≈ 4,3 | 0 → −1 | Sí |
| Imidazol de His | ≈ 6,0 | +1 → 0 | Sí |
| Tiol de Cys | ≈ 8,3 | 0 → −1 | Sí (solo tiol libre; Cys unido por disulfuro no es titulable) |
| Terminal α-amino (–NH₃⁺) | ≈ 9,0–9,6 | +1 → 0 | Sí |
| Fenol de Tyr | ≈ 10,1 | 0 → −1 | Parcialmente — requiere pH ≳ 11,5 para conversión completa |
| ε-amino de Lys | ≈ 10,5 | +1 → 0 | Parcialmente — solo ~76 % desprotonado en pH 11 |
| Guanidinio de Arg | ≈ 12,5 | +1 → 0 | No — normalmente fuera de rango y excluido de \(n\) |
Advertencia importante. Estos son valores de referencia de aminoácidos libres. Dentro de un péptido el mismo grupo típicamente se desplaza aproximadamente ±1 unidad de pH — a veces más — debido a la cadena principal adyacente, interacciones carga-carga, enlaces de hidrógeno y entierro en péptidos estructurados. Los grupos terminales se desplazan más: un α-carboxilo en un péptido está comúnmente más cerca de 3,1–3,6 y un α-amino más cerca de 7,7–8,5. Trate la tabla como una ayuda para contar \(n\), no como una fuente de posiciones exactas de curva de titulación.
Recuento elaborado. Tome el tripéptido H-Asp-Ala-Lys-OH (DAK) con ambos terminales libres, titulado con NaOH estandarizado de pH 2 a pH 11:
- α-carboxilo del Lys terminal C — cuenta, +1
- Cadena lateral de Asp — cuenta, +1
- α-amino del Asp terminal N — cuenta, +1
- ε-amino de Lys (pKa ≈ 10,5) — solo parcialmente titulado por pH 11; inclúyalo (+1) solo si barre a pH ≈ 12, de lo contrario déjelo fuera
- Ala — sin cadena lateral ionizable, no contribuye nada
Así que \(n = 3\) para una titulación de pH 2 → 11 y \(n = 4\) para un barrido tomado más allá de pH 12. Si la misma secuencia se suministrara acetilada y amidada en el C-terminal (Ac-DAK-NH₂), ambos terminales estarían bloqueados y \(n\) caería a 1 (solo Asp) en la ventana de pH 2 → 11. Siempre confirme la química terminal en el certificado de análisis del proveedor antes de elegir \(n\).
Cómo Calcular el Punto de Equivalencia a Mano
El cálculo completo es un balance estequiométrico — los moles de titulante son iguales a los moles de protones titulables:
$$C_t \times V_t = C_p \times V_s \times n \qquad\Longrightarrow\qquad V_t = \frac{C_p \times V_s \times n}{C_t}$$
- Convierta la cantidad de péptido a mM. Si comenzó a partir de un sólido pesado, use $$C_p(\text{mM}) = \frac{ \text{masa (mg)}}{MW\,(\text{g/mol}) \times V_s(\text{mL})} \times 1000$$ Utilice el contenido neto de péptido del péptido donde se conoce — los péptidos liofilizados llevan contraiones (TFA, acetato) y agua residual, así que la masa pesada típicamente sobrestima el péptido verdadero en 10–30 %.
- Calcule la cantidad de péptido en micromoles. \(n_{pep} = C_p \times V_s\). Como 1 mM × 1 mL = 1 µmol, no se necesita conversión de unidades.
- Determine \(n\) a partir de la secuencia y la ventana de pH. Cuente terminales libres más cadenas laterales ionizables cuyo pKa cae dentro del rango que realmente escaneará (vea la tabla de pKa arriba). Excluya terminales bloqueados, cisteínas unidas por disulfuro y, en un barrido acuoso normal, arginina.
- Calcule los micromoles de titulante necesarios. \(n_{eq} = C_p \times V_s \times n\).
- Resuelva lo desconocido. Divida por la concentración del titulante para obtener el volumen, \(V_t = n_{eq}/C_t\); o divida por un volumen entregable fijo para obtener la concentración que debe preparar, \(C_t = n_{eq}/V_t\).
- Compruebe las unidades. mM × mL = µmol, y µmol ÷ mM = mL. Si su respuesta está desactivada por un factor de 1000, casi seguramente mezcló M con mM o L con mL.
- Calcule el volumen y la dilución en equivalencia. \(V_{total} = V_s + V_t\), y la concentración de péptido diluido es \(C_{final} = C_p V_s / V_{total}\). El factor de dilución \(V_{total}/V_s\) importa si planea una lectura espectroscópica en la solución titulada.
- Comprobación de cordura de que \(V_t\) es práctico. Apunte a un volumen de titulante que use una buena fracción de la bureta — aproximadamente 20–80 % de su capacidad nominal, o al menos unos pocos cientos de microlitros en un microtitrador automatizado. Si \(V_t\) resulta por debajo de aproximadamente 0,1 mL, diluya el titulante; si excede el volumen de la bureta o diluye la muestra más de aproximadamente dos veces, concentre el titulante o reduzca \(V_s\).
Ejemplo elaborado
Disuelve 12,0 mg de un péptido de peso molecular 1200 g/mol en 5,00 mL de agua y titula con 50 mM NaOH estandarizado. El péptido tiene un C-terminal libre, un N-terminal libre y un residuo Glu, y escanea pH 2 → 11, así que \(n = 3\).
- Cantidad de péptido: \(12,0 \div 1200 = 0,0100\) mmol = 10,0 µmol.
- Concentración: \(C_p = 10,0\ \mu\text{mol} \div 5,00\ \text{mL} = 2,00\) mM.
- Equivalentes necesarios: \(n_{eq} = 2,00 \times 5,00 \times 3 = 30,0\) µmol de OH⁻.
- Volumen de titulante: $$V_t = \frac{2,00\ \text{mM} \times 5,00\ \text{mL} \times 3}{50\ \text{mM}} = \frac{30,0\ \mu\text{mol}}{50\ \text{mM}} = 0,600\ \text{mL}$$
El punto de equivalencia se alcanza después de 0,600 mL de 50 mM NaOH. El volumen total en equivalencia es \(5,00 + 0,600 = 5,60\) mL, y la concentración de péptido diluido es \(C_{final} = 10,0 \div 5,60 = 1,786\) mM — un factor de dilución de 1,12. Tenga en cuenta que 0,6 mL es una lectura pequeña en una bureta de 50 mL; una micro-bureta de 1 mL o 2,5 mL, o un titulante de 10 mM que da \(V_t = 3,00\) mL, se entregaría más precisamente.
Punto de Equivalencia en Escenarios de Titulación Típicos
Cada fila a continuación sigue \(V_t = C_p V_s n / C_t\), con \(V_{total} = V_s + V_t\) y \(C_{final} = C_p V_s / V_{total}\). Las filas 1–3 son la misma muestra de péptido titulada en diferentes ventanas de pH (diferentes \(n\)), que es la única fuente más grande de confusión en la práctica.
| Escenario | Cp (mM) | Vs (mL) | n | Ct (mM) | Vt (mL) | Volumen total (mL) | Cfinal (mM) |
|---|---|---|---|---|---|---|---|
| Caso estándar: 3 grupos titulables, 50 mM NaOH | 2 | 10 | 3 | 50 | 1,200 | 11,200 | 1,786 |
| Misma muestra, terminales bloqueados — solo 1 grupo titulado | 2 | 10 | 1 | 50 | 0,400 | 10,400 | 1,923 |
| Misma muestra, péptido ácido barrido más allá de pH 12 — 5 grupos | 2 | 10 | 5 | 50 | 2,000 | 12,000 | 1,667 |
| Muestra diluida, titulante diluido (pareja emparejada) | 0,2 | 25 | 2 | 10 | 1,000 | 26,000 | 0,192 |
| Muestra concentrada de pequeño volumen, titulante 100 mM | 20 | 5 | 4 | 100 | 4,000 | 9,000 | 11,111 |
| Titulante demasiado fuerte — entrega impráctica | 0,5 | 10 | 2 | 1000 | 0,010 | 10,010 | 0,4995 |
Lectura de la tabla
- \(n\) escala \(V_t\) linealmente. Las filas 1–3 difieren solo en el recuento de equivalentes, y \(V_t\) se mueve de 0,400 a 2,000 mL. Contar erróneamente un solo grupo ionizable en un tripéptido es un error del 33 %, que es mucho más grande que cualquier error realista de bureta.
- Empareje la fortaleza del titulante con la carga de muestra. La fila diluida (0,2 mM en 25 mL) contiene solo 10 µmol de protones titulables y necesita un titulante de 10 mM para dar una lectura legible de 1,000 mL; la fila concentrada lleva 400 µmol y necesita 100 mM para mantenerse por debajo de 5 mL. Una regla útil es elegir \(C_t \approx C_p \times n \times V_s / V_{target}\), con \(V_{target}\) establecido en una lectura de bureta cómoda.
- La última fila es un modo de fallo, no una receta. Un titulante de 1 M contra 10 µmol de protones requiere 10 µL — por debajo de la resolución de la mayoría de buretas manuales, y una sola gota errante (~50 µL) excedería el punto de equivalencia cinco veces. Diluir ese titulante 100 veces a 10 mM mueve \(V_t\) a 1,000 mL y restaura la precisión usable.
- Vigile la dilución. La fila n = 5 diluye el péptido de 2 mM a 1,667 mM (un factor de 1,20) en el momento en que se alcanza la equivalencia. Si planea medir absorbancia, fluorescencia o un ensayo posterior en la solución titulada, corrija \(V_{total}/V_s\) en lugar de asumir la concentración inicial.
Preguntas frecuentes
¿El punto de equivalencia coincide con pH 7? No. En un péptido valorado con una base fuerte, el punto de equivalencia suele quedar bastante por encima de 7, porque la base conjugada es débilmente básica; usa el volumen calculado como objetivo y lee el pH real en tu curva.
¿Y si solo conozco la masa y no la molaridad? Divide la masa en miligramos entre el peso molecular del péptido en g/mol para obtener micromoles y, después, divide entre el volumen de muestra en mL para llegar a mM.
¿Por qué mi punto final medido es mayor que el previsto? Las sales del tampón, el CO2 disuelto y los contraiones presentes en un péptido liofilizado también consumen valorante. Haz una valoración en blanco solo con el tampón y réstala.