ما وظيفة هذه الحاسبة؟
الصق تسلسل البروتين بنظام الرموز الأحادية للأحماض الأمينية، وستعرض لك الحاسبة وزنه الجزيئي المتوسط بالدالتون ومعامل الامتصاص المولاري عند 280 نانومتر. وبهاتين القيمتين يمكنك تحويل قراءة مقياس الطيف الضوئي (السبكتروفوتومتر) إلى تركيز البروتين. تُحذف تلقائيًا أسطر عناوين FASTA التي تبدأ بالرمز > وكل الرموز التي ليست حروفًا.
طريقة الاستخدام
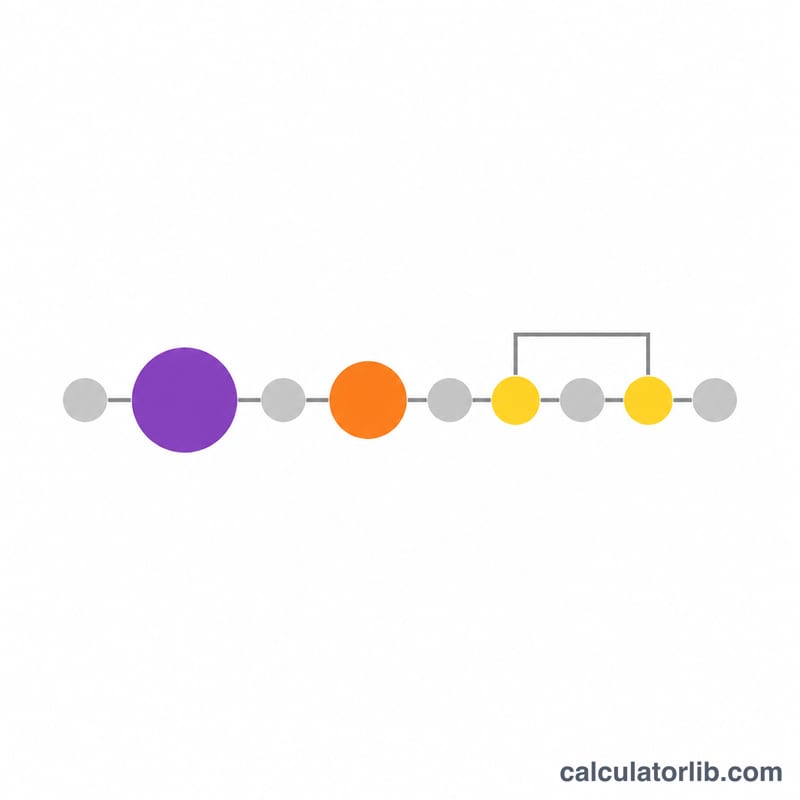
أدخل التسلسل، ثم حدّد عدد الروابط ثنائية الكبريت (أزواج السيستين) المتكوّنة. اترك القيمة 0 إذا كان البروتين مختزلًا؛ وتُحدَّد القيمة العليا بنصف عدد السيستينات. ويمكنك اختياريًا إدخال قراءة A280 المقيسة وطول مسار الخلية (الكوفيت)، وهو عادةً 1 سم، لتحصل على التركيز بالميكرومولار وبالملغ/مل.
المعادلات
يعتمد معامل الامتصاص على طريقة Pace، حيث \(n_W\) عدد التريبتوفان، و\(n_Y\) عدد التيروزين، و\(n_{SS}\) عدد الروابط ثنائية الكبريت:
$$\varepsilon_{280} = 5500\,n_W + 1490\,n_Y + 125\,n_{SS}$$أما الوزن الجزيئي فهو مجموع متوسط كتل المخلّفات \(m_i\) مضافًا إليه جزيء ماء واحد (18.01524 دالتون)، مطروحًا منه نحو 2.016 دالتون لكل رابطة ثنائية الكبريت، لأن تكوين الرابطة يزيل ذرتي هيدروجين:
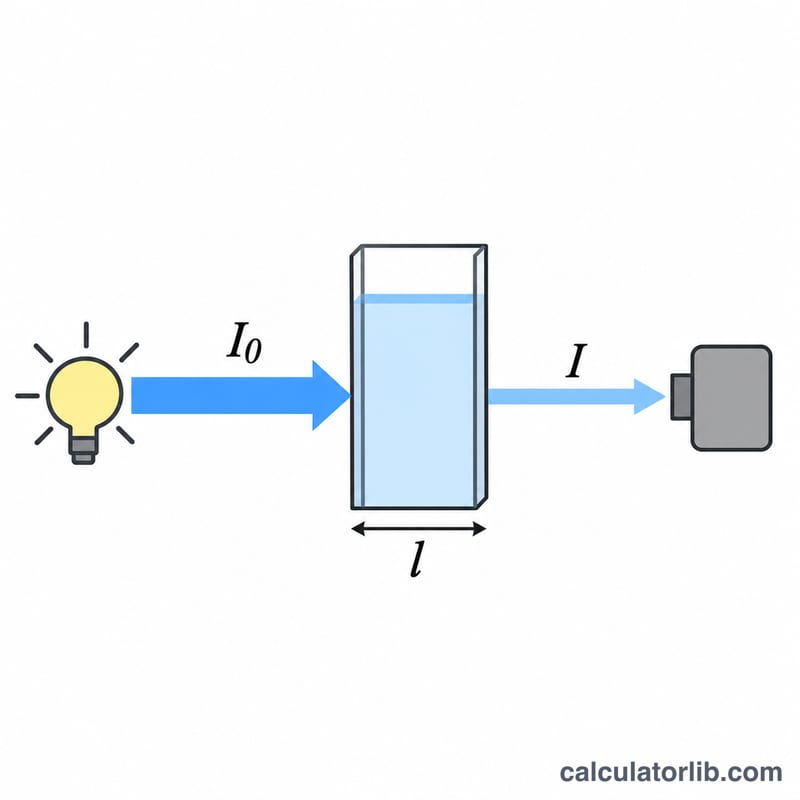
$$MW = \sum_i m_i + 18.01524 - 2.01588\,n_{SS}$$ويتبع التركيز قانون بير-لامبرت، \(c = A/(\varepsilon\,l)\)، وبالملغ/مل يساوي \(c \times MW\) حيث \(c\) بالمول/لتر.
مثال محلول
لنأخذ الببتيد الثلاثي AWY دون روابط ثنائية الكبريت. مجموع كتل المخلّفات 71.0788 + 186.2132 + 163.1760 = 420.4680 دالتون، وبإضافة الماء نحصل على:
$$MW = 420.468 + 18.01524 = 438.483\,\text{Da}$$$$\varepsilon_{280} = 5500 + 1490 = 6990\,\text{M}^{-1}\text{cm}^{-1}$$وعندما تكون قراءة A280 تساوي 1.0 في خلية طولها 1 سم، يكون \(c = 1/6990 = 143.1\,\mu\text{M}\)، أي 0.0627 ملغ/مل.
متوسط كتل بقايا الأحماض الأمينية العشرين
تحسب الأداة مجموع متوسط كتلة البقايا لكل حمض أميني في التسلسل. البقية هي الحمض الأميني ناقص جزيء ماء واحد (H2O)، وهو الماء الذي يُفقد عند تكوّن الرابطة الببتيدية. تُقاس الكتل بالدالتون (Da، ويساوي g/mol).
| الحمض الأميني | رمز من 3 أحرف | رمز من حرف واحد | متوسط كتلة البقية (Da) |
|---|---|---|---|
| الجلايسين | Gly | G | 57.0519 |
| الألانين | Ala | A | 71.0788 |
| السيرين | Ser | S | 87.0782 |
| البرولين | Pro | P | 97.1167 |
| الفالين | Val | V | 99.1326 |
| الثريونين | Thr | T | 101.1051 |
| السيستين | Cys | C | 103.1388 |
| الليوسين | Leu | L | 113.1594 |
| الأيزولوسين | Ile | I | 113.1594 |
| الأسباراجين | Asn | N | 114.1038 |
| حمض الأسپارتيك | Asp | D | 115.0886 |
| الجلوتامين | Gln | Q | 128.1307 |
| الليسين | Lys | K | 128.1741 |
| حمض الغلوتاميك | Glu | E | 129.1155 |
| الميثионين | Met | م | 131.1926 |
| الهيستidine | His | H | 137.1411 |
| الفينيل ألانين | Phe | F | 147.1766 |
| الأرجينين | Arg | R | 156.1875 |
| التيروسين | Tyr | Y | 163.1760 |
| التريبتوفان | Trp | W | 186.2132 |
بعد جمع جميع البقايا، يُضاف 18.01524 Da (جزيء ماء واحد) لذرة H الحرة في الطرف N ومجموعة OH الحرة في الطرف C للسلسلة. ثم يُطرح 2.01588 Da (ذرتا هيدروجين) مع كل رابطة ثنائية كبريتيدية.
الثوابت والمعاملات المستخدمة
يتبع معامل الانطفاء عند 280 nm طريقة Pace، التي تقدّر ε من عدد بقايا Trp وTyr والسيستين (cystine) لبروتين في حالته الأصلية المطوية.
| الكمية | القيمة |
|---|---|
| ε280 للتريبتوفان | 5500 M-1 cm-1 |
| ε280 للتيروسين | 1490 M-1 cm-1 |
| ε280 للسيستين (ثنائي الكبريتيد) | 125 M-1 cm-1 |
| الماء المضاف لكل سلسلة | 18.01524 Da |
| الكتلة المفقودة لكل رابطة ثنائية كبريتيدية | 2.01588 Da |
| طول المسار الافتراضي | 1 cm |
| وحدات الكتلة | 1 Da = 1 g/mol; 1 kDa = 1000 Da |
العلاقات الأساسية:
$$\varepsilon = 5500\,n_W + 1490\,n_Y + 125\,N_{SS}$$
$$A_{0.1\%} = \frac{ \varepsilon }{ M }$$
يُحدّ عدد ثنائيات الكبريتيد المستخدمة بالقيمة \(\lfloor n_C/2 \rfloor\)، لأن كل رابطة ثنائية تحتاج إلى سيستينين. هنا \(n_W\) و\(n_Y\) و\(n_C\) هي أعداد Trp وTyr وCys في التسلسل. A0.1% هو امتصاصية محلول تركيزه 1 mg/mL في مسار 1 cm.
المصطلحات والتعريفات الرئيسية
- معامل الانطفاء المولي (ε)
- مدى قوة امتصاص المادة للضوء عند طول موجي معين، لكل مول ولكل لتر ولكل سم من المسار. يُعطى بوحدة M-1 cm-1. بالنسبة للبروتينات عند 280 nm يتحدد بشكل أساسي بواسطة Trp وTyr، مع مساهمة صغيرة من ثنائيات الكبريتيد.
- A0.1%
- الامتصاصية عند 280 nm لمحلول بروتين تركيزه 0.1% (1 mg/mL) في مسار 1 cm. تساوي ε مقسومة على الوزن الجزيئي بالدالتون.
- A280
- الامتصاصية المقاسة عند 280 nm، وتُستخدم لتقدير تركيز البروتين.
- طول المسار
- المسافة بالسنتيمتر التي يقطعها الضوء داخل العينة، وعادةً 1 cm في الكوفيت القياسية. تستخدم أجهزة الحجم الصغير مسارات أقصر غالباً.
- السيستين / الرابطة ثنائية الكبريتيد
- رابطة تساهمية S–S تتكون بين سلسلتين جانبيتين من السيستين. يؤدي تكوّنها إلى إزالة ذرتي هيدروجين (2.01588 Da) وإضافة امتصاصية صغيرة عند 280 nm.
- الوزن الجزيئي المتوسط مقابل الكتلة أحادية النظير
- الوزن الجزيئي المتوسط يرجّح كل عنصر حسب وفرته الطبيعية من النظائر، وهو القيمة المستخدمة للتركيز وحسابات التفاعل الكيميائي (ستوكيومترية). أما الكتلة أحادية النظير فتستخدم النظير الأكثر وفرة لكل عنصر فقط، وهي القيمة المستخدمة في قياس الطيف الكتلي عالي الدقة للببتيدات الأصغر.
- الدالتون (Da) والكيلودالتون (kDa)
- 1 Da يساوي عددياً 1 g/mol. 1 kDa = 1000 Da.
- قانون بير-لامبرت
- الامتصاصية تتناسب طردياً مع التركيز وطول المسار: \(A = \varepsilon \cdot c \cdot l\). وبإعادة الترتيب: \(c = A / (\varepsilon \cdot l)\)، وهذا يعطي التركيز المولي عندما تكون ε بوحدة M-1 cm-1 وl بوحدة cm. ويكون أدق عند امتصاصيات تقارب 0.1 إلى 1.
الأسئلة الشائعة
لماذا قد تختلف النتيجة عن قياسي العملي؟
طريقة Pace تقدير نظري. فالطي البنيوي والعوامل المساعدة المرتبطة بالبروتين والمخلّفات المجاورة قد تغيّر القيمة الحقيقية بنسبة تصل إلى عدة بالمئة، لذا استخدم معامل امتصاص مقيسًا عمليًا عندما تكون الدقة مهمة.
ماذا لو لم يحتوِ بروتيني على تريبتوفان أو تيروزين؟
سيكون معامل الامتصاص صفرًا أو صغيرًا جدًا، ولذلك لا تصلح قراءة A280 لتقدير التركيز. جرّب القياس عند A205 أو استخدم اختبارًا لونيًا.
هل تأخذ الحاسبة التعديلات بعد الترجمة في الحسبان؟
لا. فالارتباط بالسكريات (الجلكزة) والفسفرة والوسوم المُزالة بالقطع الإنزيمي وغيرها من التعديلات غير محتسبة.