ما وظيفة هذه الحاسبة؟
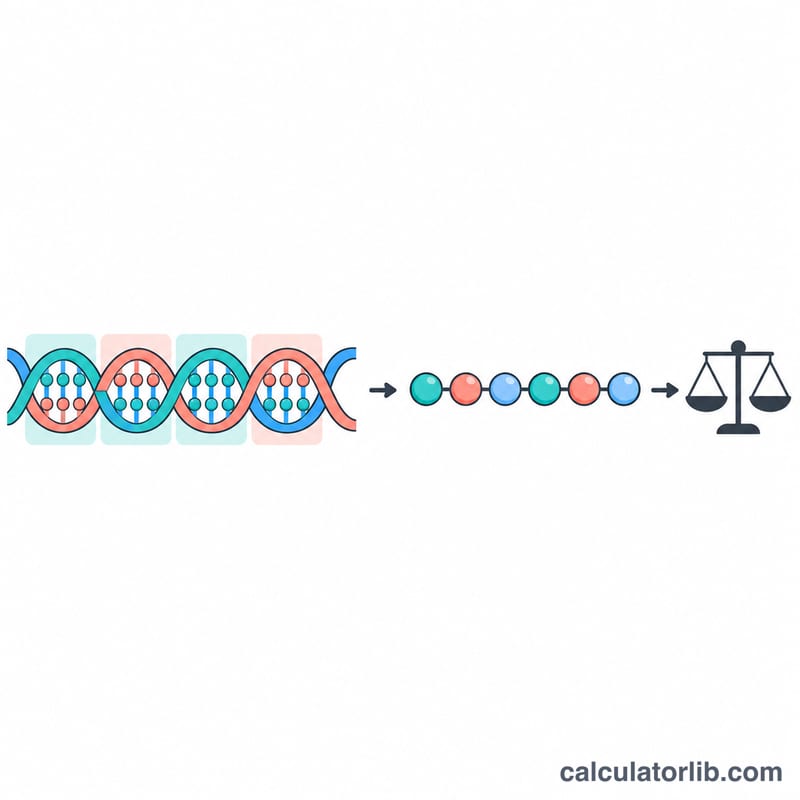
تقرأ هذه الأداة تسلسل DNA الترميزي (من الطرف ′5 إلى ′3)، وتترجمه باستخدام الشيفرة الوراثية القياسية وفق إطار القراءة الذي تختاره، ثم تحسب متوسط الوزن الجزيئي للبروتين الناتج. تقبل الأداة التسلسل العادي أو نص FASTA، وتعامل الحرف U على أنه T، وتتجاهل المسافات والأرقام. معرفة الكتلة بالكيلودالتون تساعدك على تخطيط هلام SDS-PAGE، واختيار أعمدة التنقية، وتقدير معامل الامتصاص والمردود، والتأكد من أن البروتين المعبَّر عنه يطابق حجم الحزمة المتوقع.
طريقة الاستخدام
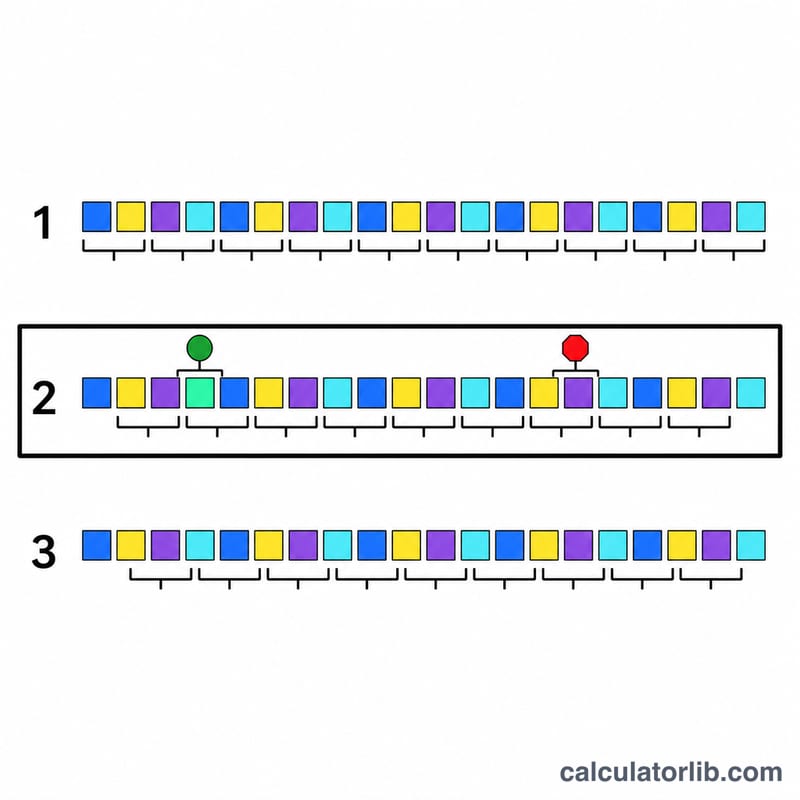
الصق تسلسلك الترميزي، واختر الإطار 1 أو 2 أو 3، وحدد هل تتوقف الترجمة عند أول كودون توقف (وهو الخيار المعتاد للجين الواحد) أم تتجاوز كودونات التوقف وتواصل الترجمة. تعرض النتيجة الوزن بالكيلودالتون والدالتون، وعدد الأحماض الأمينية، ونسبة GC، وتسلسل البروتين المترجَم.
شرح المعادلة
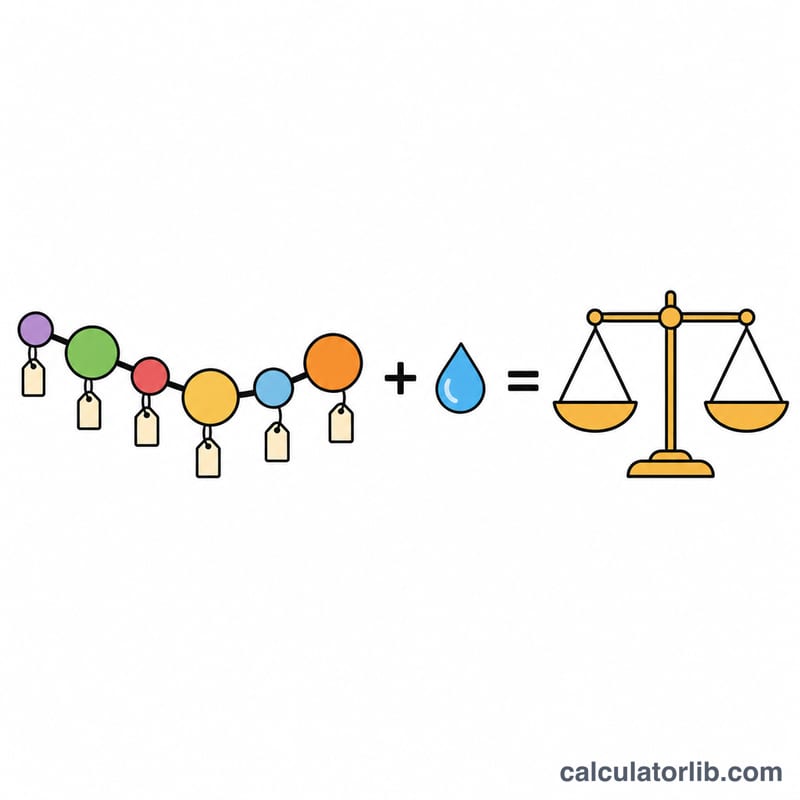
يسهم كل حمض أميني بكتلة بقيته، وهي كتلة الحمض الأميني الحر مطروحًا منها جزيء ماء واحد يُفقد عند تكوين الرابطة الببتيدية. ثم يُضاف جزيء ماء واحد مرة أخرى مقابل ذرة H في الطرف الأميني (N) ومجموعة OH في الطرف الكربوكسيلي (C).
$$\text{MW} = \sum_i n_i \, m_i + 18.01524$$حيث \(n_i\) هو عدد الحمض الأميني \(i\) و\(m_i\) هو متوسط كتلة بقيته بالدالتون. بعد ذلك \(\text{kDa} = \text{Da}/1000\).
مثال محلول
خذ التسلسل ATGGGCTAA في الإطار 1. يُقرأ ATG (Met) ثم GGC (Gly) ثم TAA (توقف)، فيكون البروتين Met-Gly.
$$\text{MW} = 131.1926 + 57.0519 + 18.0152 = 206.2597\,\text{Da} = 0.2063\,\text{kDa}$$كتلة البقايا المتوسطة للأحماض الأمينية
تجمع الآلة الحاسبة الكتلة المتوسطة (المرجّحة بالنظائر) لكل بقية حمض أميني، أي الحمض الأميني ناقصًا جزيء ماء واحد يُفقد عند تكوين رابطة الببتيد، ثم تضيف جزيء ماء واحدًا (18.01524 دالتون) للطرف N الحر (H) والطرف C الحر (OH) للسلسلة كاملة. القيم بالدالتون (Da).
| الحمض الأميني | الرمز ثلاثي الأحرف | الرمز أحادي الحرف | كتلة البقية المتوسطة (Da) |
|---|---|---|---|
| الجليسين | Gly | G | 57.0519 |
| الألانين | Ala | A | 71.0788 |
| السيرين | Ser | S | 87.0782 |
| البرولين | Pro | P | 97.1167 |
| الفالين | Val | V | 99.1326 |
| الثريونين | Thr | T | 101.1051 |
| السيستين | Cys | C | 103.1388 |
| الليوسين | Leu | L | 113.1594 |
| الأيزوليوسين | Ile | I | 113.1594 |
| الأسباراجين | Asn | N | 114.1038 |
| حمض الأسبارتيك | Asp | D | 115.0886 |
| الغلوتامين | Gln | Q | 128.1307 |
| الليسين | Lys | K | 128.1741 |
| حمض الغلوتاميك | Glu | E | 129.1155 |
| الميثионين | Met | M | 131.1926 |
| الهيستidine | His | H | 137.1411 |
| الفينيل ألانين | Phe | F | 147.1766 |
| الأرجينين | Arg | R | 156.1875 |
| التيروزين | Tyr | Y | 163.1760 |
| التريبتوفان | Trp | W | 186.2132 |
يُضاف الماء مرة واحدة لكل سلسلة: 18.01524 Da.
مثال يدوي: ثنائي الببتيد ميثيونين-جليسين له كتلة \(131.1926 + 57.0519 + 18.01524 = 206.25974\) Da.
جدول الشيفرة الوراثية القياسية للكودونات
هذا هو الشيفرة الوراثية النووية القياسية (العالمية)، مجمّعة حسب الحمض الأميني. تُكتب الكودونات بصيغة الحمض النووي الريبوزي منقوص الأكسجين (A وC وG وT)، وإذا كان تسلسلك رنا فإن U تُقرأ كما لو كانت T. ATG (ميثيونين) هو كودون البدء المعتاد، وTAA وTAG وTGA هي كودونات التوقف. بعض العضيات (مثل الميتوكوندريا) وبعض الكائنات تستخدم شيفرات متغيرة لا يغطيها هذا الجدول القياسي.
| الحمض الأميني | الكودونات | العدد |
|---|---|---|
| فينيل ألانين (F) | TTT, TTC | 2 |
| ليوسين (L) | TTA, TTG, CTT, CTC, CTA, CTG | 6 |
| أيزوليوسين (I) | ATT, ATC, ATA | 3 |
| ميثيونين (M) | ATG (كودون البدء) | 1 |
| فالين (V) | GTT, GTC, GTA, GTG | 4 |
| سيرين (S) | TCT, TCC, TCA, TCG, AGT, AGC | 6 |
| برولين (P) | CCT, CCC, CCA, CCG | 4 |
| ثريونين (T) | ACT, ACC, ACA, ACG | 4 |
| ألانين (A) | GCT, GCC, GCA, GCG | 4 |
| تيروزين (Y) | TAT, TAC | 2 |
| هيستidine (H) | CAT, CAC | 2 |
| غلوتامين (Q) | CAA, CAG | 2 |
| أسباراجين (N) | AAT, AAC | 2 |
| ليسين (K) | AAA, AAG | 2 |
| حمض الأسبارتيك (D) | GAT, GAC | 2 |
| حمض الغلوتاميك (E) | GAA, GAG | 2 |
| سيستين (C) | TGT, TGC | 2 |
| تريبتوفان (W) | TGG | 1 |
| أرجينين (R) | CGT, CGC, CGA, CGG, AGA, AGG | 6 |
| جليسين (G) | GGT, GGC, GGA, GGG | 4 |
| توقف | TAA, TAG, TGA | 3 |
المجموع: 61 كودونًا حسيًا + 3 كودونات توقف = 64.
تفسير كتلة البروتين لديك
النتيجة هي الكتلة المتوسطة النظرية للببتيد المتعدد غير المعدّل المشفّر في تسلسلك. 1 كيلودالتون = 1000 Da، لذا فإن نتيجة قدرها 33,000 Da تساوي 33 كيلودالتون. كفحص سريع للتقدير، يسهم الحمض الأميني المتوسط بنحو 110 Da، لذا \(\text{MW (Da)} \approx N_{\text{aa}} \times 110\): بروتين من 100 بقية يبلغ نحو 11 كيلودالتون، وبروتين من 300 بقية نحو 33 كيلودالتون. تختلف البروتينات الحقيقية عن هذا التقدير بحسب تركيبها.
لماذا قد يختلف نطاق SDS-PAGE عن الكتلة المحسوبة
- الوسوم والاندماجات: وسم His6 يضيف نحو 0.8 كيلودالتون من البقايا بالإضافة إلى أي رابط، أما شركاء الاندماج الأكبر فيضيفون أكثر بكثير. تحقق مما إذا كان تسلسلك يتضمن الوسم وما إذا كنت قد ترجمته.
- قطع peptide الإشارة: غالبًا ما تفقد البروتينات المفرزة أو الغشائية تسلسل الإشارة الطرفي N (عادةً حوالي 15–30 بقية)، لذا يكون البروتين الناضج أخف من الترجمة الكاملة.
- التعديلات بعد الترجمة: الارتباط بالسكريات، والفسفرة، والدهننة، والمعالجة البروتينية، وإزالة الميثيونين البادئ، وروابط ثنائي الكبريتيد (نحو −2.016 Da لكل منها) تغيّر الكتلة الحقيقية. قد تضيف الغلكزة عدة كيلودالتونات وتسبب انتشار النطاق.
- إطار أو شريط خاطئ: يعطي إطار القراءة المختلف بروتينًا مختلفًا تمامًا، غالبًا ما ينتهي مبكرًا عند كودون توقف. إذا كانت النتيجة أصغر بكثير من المتوقع، فجرّب الأطر 1–3 وفكّر في المكمل العكسي لتسلسلك.
- سلوك الهلام: SDS-PAGE تقريبي فقط (غالبًا ضمن نحو 10%)، وقد تهاجر البروتينات شديدة الحمضية أو القاعدية أو الكارهة للماء بشكل غير طبيعي.
- كودونات التوقف: طريقة التعامل مع توقف داخلي أو طرفي (التي يحددها خيار كودون التوقف) تغيّر عدد البقايا المحتسبة.
الكتلة المتوسطة مقابل الكتلة أحادية النظير
تستخدم هذه الآلة الحاسبة الكتل المتوسطة، التي تُرجّح كل عنصر حسب وفرته الطبيعية من النظائر. وهي تتوافق مع مركز مغلف النظائر، وتناسب البروتينات الأكبر في مطيافية الكتلة. أما الكتلة أحادية النظير فتستخدم النظير الأكثر وفرة فقط لكل عنصر (مثل 12C)، وتُستخدم عادةً للببتيدات والأجهزة عالية الدقة؛ وهي أقل قليلًا من الكتلة المتوسطة، ويزداد الفرق مع الحجم. لا تقارن بينهما مباشرة.
هذه الأداة مخصصة للبحث والتخطيط لتجارب التعبير والتنقية؛ وهي توفر معلومات عامة فقط، وليست نصيحة طبية أو تشخيصية.
الأسئلة الشائعة
هل تشمل الحاسبة الوسوم أو التعديلات؟ لا. تُحسب الأحماض الأمينية المترجمة فقط، لذا أضف كتلة أي وسم غير موجود في تسلسلك، وتذكّر أن الفسفرة أو الارتباط بالسكريات (الغلكزة) أو قطع الببتيد الإشاري تغيّر الحجم الملاحَظ.
لماذا تبدو الكتلة خاطئة؟ تحقق من إطار القراءة، ومن أن تسلسلك هو الشريط الترميزي وليس المكمّل العكسي.
هل الكتلة أحادية النظائر؟ لا، إنها متوسط الكتلة، وهو أقرب إلى تقديرات الهلام وكروماتوغرافيا الإقصاء الحجمي (SEC) من القيم أحادية النظائر.