Что делает этот калькулятор
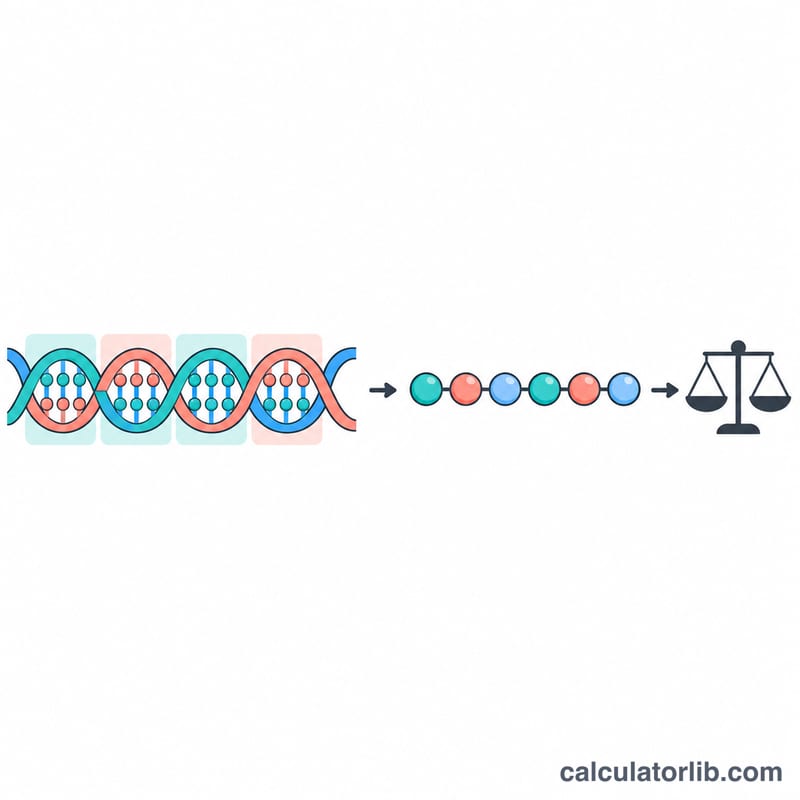
Инструмент читает кодирующую последовательность ДНК (5′→3′), транслирует её по стандартному генетическому коду в выбранной рамке считывания и рассчитывает среднюю молекулярную массу получившегося белка. Можно вставлять как обычную последовательность, так и текст в формате FASTA: U воспринимается как T, а пробелы и цифры игнорируются. Зная массу в кДа, проще спланировать SDS-ПААГ-электрофорез, подобрать колонки для очистки, оценить коэффициент экстинкции и выход белка, а также убедиться, что полоса экспрессируемой конструкции соответствует ожидаемому размеру.
Как пользоваться
Вставьте кодирующую последовательность, выберите рамку 1, 2 или 3 и решите, должна ли трансляция останавливаться на первом стоп-кодоне (обычный вариант для одного гена) или стоп-кодоны нужно пропускать и продолжать считывание. В результате вы увидите массу в кДа и Да, число аминокислот, GC-состав и транслированную последовательность белка.
Формула расчёта
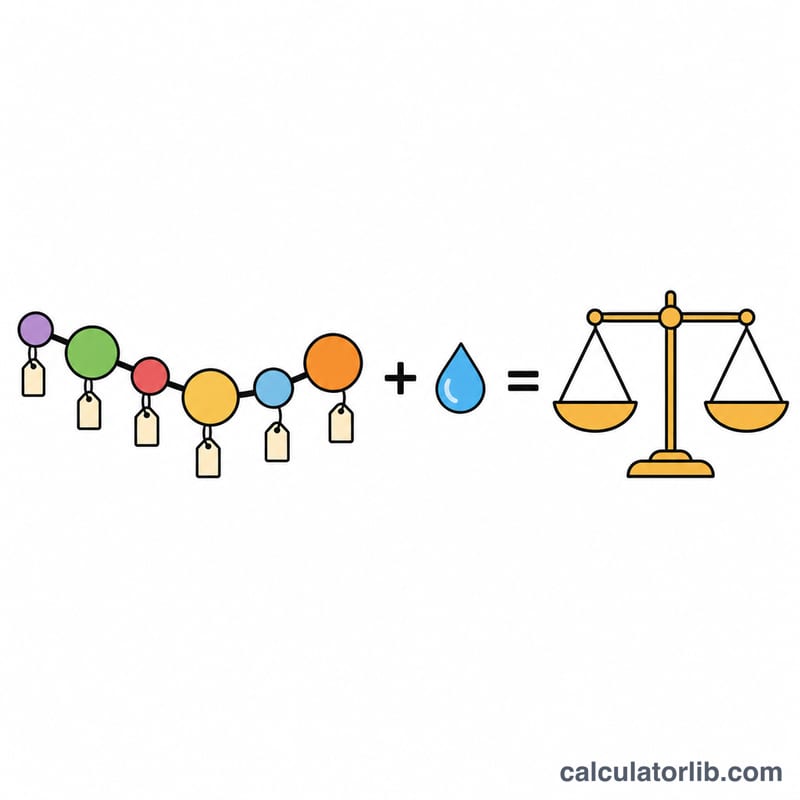
Каждая аминокислота вносит вклад своей массой остатка — это масса свободной аминокислоты за вычетом одной молекулы воды, теряемой при образовании пептидной связи. Одна молекула воды прибавляется обратно для N-концевого H и C-концевого OH.
$$ ext{MW} = \sum_i n_i \, m_i + 18.01524$$Здесь \(n_i\) — число аминокислот типа \(i\), а \(m_i\) — средняя масса её остатка в Да. Тогда \(\text{kDa} = \text{Da}/1000\).
Пример расчёта
Возьмём последовательность ATGGGCTAA в рамке 1. Она читается как ATG (Met), GGC (Gly), TAA (стоп), поэтому белок — Met-Gly.
$$\text{MW} = 131.1926 + 57.0519 + 18.0152 = 206.2597\,\text{Da} = 0.2063\,\text{kDa}$$Частые вопросы
Учитываются ли теги и модификации? Нет. Считаются только транслированные аминокислоты, поэтому массу тега, которого нет в вашей последовательности, нужно добавить отдельно. Кроме того, фосфорилирование, гликозилирование или отщепление сигнального пептида меняют наблюдаемый размер белка.
Почему масса получилась неверной? Проверьте рамку считывания и убедитесь, что введена кодирующая цепь, а не обратный комплемент.
Это моноизотопная масса? Нет, это средняя масса. Она лучше согласуется с оценками по гелю и эксклюзионной хроматографии (SEC), чем моноизотопные значения.
Средние массы остатков аминокислот
Калькулятор суммирует среднюю (с учётом изотопного состава) массу остатка каждой аминокислоты, то есть массы аминокислоты за вычетом одной молекулы воды, теряемой при образовании пептидной связи, а затем прибавляет одну молекулу воды (18,01524 Да) для свободного N-конца (H) и C-конца (OH) всей цепи. Значения приведены в дальтонах (Да).
| Аминокислота | Трёхбуквенный код | Однобуквенный код | Средняя масса остатка (Да) |
|---|---|---|---|
| Глицин | Gly | G | 57,0519 |
| Аланин | Ala | A | 71,0788 |
| Серин | Ser | S | 87,0782 |
| Пролин | Pro | P | 97,1167 |
| Валин | Val | V | 99,1326 |
| Треонин | Thr | T | 101,1051 |
| Цистеин | Cys | C | 103,1388 |
| Лейцин | Leu | L | 113,1594 |
| Изолейцин | Ile | I | 113,1594 |
| Аспарагин | Asn | N | 114,1038 |
| Аспарагиновая кислота | Asp | D | 115,0886 |
| Глутамин | Gln | Q | 128,1307 |
| Лизин | Lys | K | 128,1741 |
| Глутаминовая кислота | Glu | E | 129,1155 |
| Метионин | Met | M | 131,1926 |
| Гистидин | His | H | 137,1411 |
| Фенилаланин | Phe | F | 147,1766 |
| Аргинин | Arg | R | 156,1875 |
| Тирозин | Tyr | Y | 163,1760 |
| Триптофан | Trp | W | 186,2132 |
Вода, добавляемая один раз на цепь: 18,01524 Да.
Пример расчёта вручную: дипептид Met-Gly имеет массу \(131.1926 + 57.0519 + 18.01524 = 206.25974\) Да.
Стандартная таблица кодонов генетического кода
Это стандартный (универсальный) ядерный генетический код, сгруппированный по аминокислотам. Кодоны записаны как ДНК (A, C, G, T); если ваша последовательность является РНК, U читается как T. ATG (Met) — обычный стартовый кодон, а TAA, TAG и TGA — стоп-кодоны. Некоторые органеллы (например, митохондрии) и некоторые организмы используют варианты кода, которые не охватываются этой стандартной таблицей.
| Аминокислота | Кодоны | Количество |
|---|---|---|
| Phe (F) | TTT, TTC | 2 |
| Leu (L) | TTA, TTG, CTT, CTC, CTA, CTG | 6 |
| Ile (I) | ATT, ATC, ATA | 3 |
| Met (M) | ATG (стартовый кодон) | 1 |
| Val (V) | GTT, GTC, GTA, GTG | 4 |
| Ser (S) | TCT, TCC, TCA, TCG, AGT, AGC | 6 |
| Pro (P) | CCT, CCC, CCA, CCG | 4 |
| Thr (T) | ACT, ACC, ACA, ACG | 4 |
| Ala (A) | GCT, GCC, GCA, GCG | 4 |
| Tyr (Y) | TAT, TAC | 2 |
| His (H) | CAT, CAC | 2 |
| Gln (Q) | CAA, CAG | 2 |
| Asn (N) | AAT, AAC | 2 |
| Lys (K) | AAA, AAG | 2 |
| Asp (D) | GAT, GAC | 2 |
| Glu (E) | GAA, GAG | 2 |
| Cys (C) | TGT, TGC | 2 |
| Trp (W) | TGG | 1 |
| Arg (R) | CGT, CGC, CGA, CGG, AGA, AGG | 6 |
| Gly (G) | GGT, GGC, GGA, GGG | 4 |
| Стоп | TAA, TAG, TGA | 3 |
Итого: 61 смысловой кодон + 3 стоп-кодона = 64.
Интерпретация массы вашего белка
Результат — теоретическая средняя масса немодифицированного полипептида, закодированного вашей последовательностью. 1 кДа = 1000 Да, поэтому результат 33 000 Да соответствует 33 кДа. Для грубой проверки: средняя аминокислота вносит около 110 Да, поэтому \(\text{MW (Да)} \approx N_{\text{aa}} \times 110\): белок из 100 остатков имеет массу около 11 кДа, а белок из 300 остатков — около 33 кДа. Реальные белки отклоняются от этой оценки в зависимости от своего состава.
Почему полоса в SDS-PAGE может отличаться от расчётной массы
- Метки и слияния: метка His6 добавляет примерно 0,8 кДа остатков плюс любой линкер; более крупные партнёры слияния добавляют гораздо больше. Проверьте, включена ли метка в вашу последовательность и transltirovali li вы её.
- Отщепление сигнального пептида: секретируемые или мембранные белки часто теряют N-концевую сигнальную последовательность (обычно около 15–30 остатков), поэтому зрелый белок легче полной трансляции.
- Посттрансляционные модификации: гликозилирование, фосфорилирование, липидирование, протеолитический процессинг, удаление инициаторного Met и дисульфидные связи (примерно −2,016 Да каждая) изменяют истинную массу. Гликозилирование может добавить несколько кДа и размыть полосу.
- Неправильная рамка или цепь: другая рамка считывания даёт совершенно другой белок, часто обрывающийся раньше стоп-кодона. Если результат слишком мал, попробуйте рамки 1–3 и рассмотрите обратную комплементарную последовательность вашей ДНК.
- Поведение в геле: SDS-PAGE лишь приблизительна (часто в пределах около 10%); сильно кислые, основные или гидрофобные белки могут мигрировать аномально.
- Стоп-кодоны: то, как обрабатывается внутренний или концевой стоп-кодон (задаётся параметром стоп-кодона), меняет количество учитываемых остатков.
Средняя и моноизотопная масса
Этот калькулятор использует средние массы, которые учитывают природное распространение изотопов каждого элемента. Они соответствуют центроиду изотопного профиля и подходят для более крупных белков в масс-спектрометрии. Моноизотопная масса использует только самый распространённый изотоп каждого элемента (например, 12C) и обычно применяется для пептидов и высокоразрешающих приборов; она немного ниже средней массы, и разница растёт с размером. Не сравнивайте эти две величины напрямую.
Этот инструмент предназначен для исследований и планирования экспериментов по экспрессии и очистке; он предоставляет только общую информацию и не является медицинской или диагностической рекомендацией.