ハーディ・ワインベルグ平衡とは?
ハーディ・ワインベルグの法則は、進化が起きていない集団、つまり対立遺伝子頻度と遺伝子型頻度が世代を超えて一定に保たれる状態を表したものです。2種類の対立遺伝子をもつ遺伝子の場合、優性(顕性)対立遺伝子の頻度を p、劣性(潜性)対立遺伝子の頻度を q とします。対立遺伝子はこの2つだけなので、合計は必ず1になります(\(p + q = 1\))。この平衡が成り立つのは、自然選択・突然変異・移入移出・遺伝的浮動がなく、交配がランダムに行われる場合に限られます。
この計算ツールの使い方
まず、わかっている値が優性対立遺伝子頻度(\(p\))か劣性対立遺伝子頻度(\(q\))かを選び、0〜1の間の数値を入力します。すると、もう一方の対立遺伝子頻度と、3つの期待される遺伝子型頻度(優性ホモ接合 \(p^2\)、ヘテロ接合 \(2pq\)、劣性ホモ接合 \(q^2\))が自動的に求められます。それぞれは割合と、集団全体に占めるパーセンテージの両方で表示されます。
計算式の解説
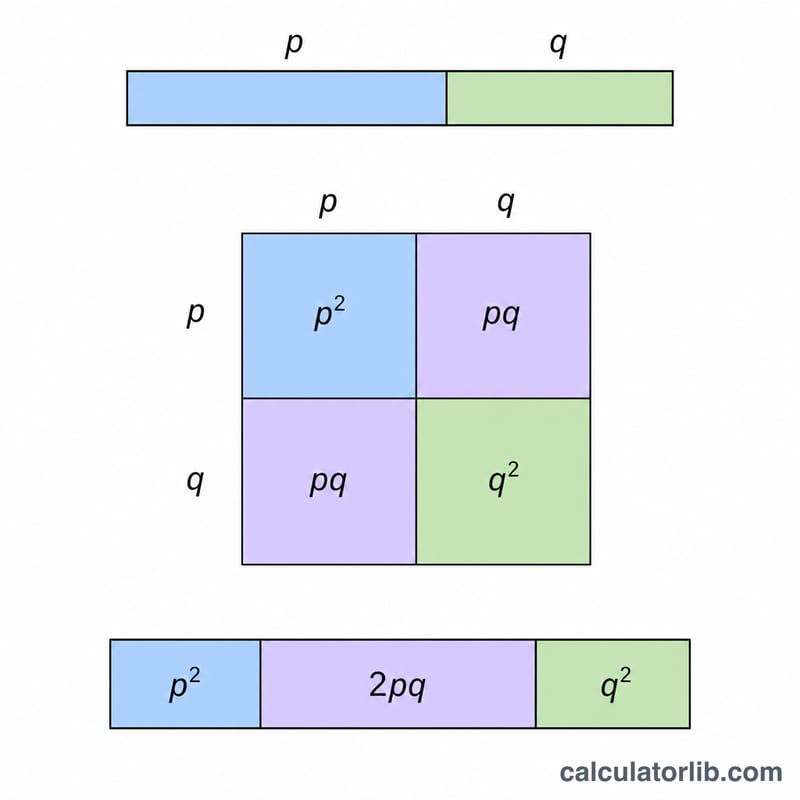
二項式 \((p + q)^2 = 1\) を展開すると、 $$p^2 + 2pq + q^2 = 1$$ となります。各項がそれぞれ遺伝子型頻度を表しており、\(p^2\) は優性対立遺伝子を2つもつ個体の割合、\(q^2\) は劣性対立遺伝子を2つもつ個体の割合、\(2pq\) はヘテロ接合体の割合です。実際の研究では、目に見える劣性形質(たとえば発症している個体)として \(q^2\) を測定し、そこから \(q = \sqrt{q^2}\)、さらに \(p = 1 - q\) と逆算するケースがよくあります。
計算例
劣性対立遺伝子頻度を \(q = 0.3\) とします。すると \(p = 1 - 0.3 = 0.7\) です。遺伝子型頻度は、\(p^2 = 0.49\)(優性ホモ接合49%)、\(2pq = 2 \times 0.7 \times 0.3 = 0.42\)(ヘテロ接合42%)、\(q^2 = 0.09\)(劣性ホモ接合9%)となります。これらを合計すると $$0.49 + 0.42 + 0.09 = 1.00$$ となり、集団が平衡状態にあることが確認できます。
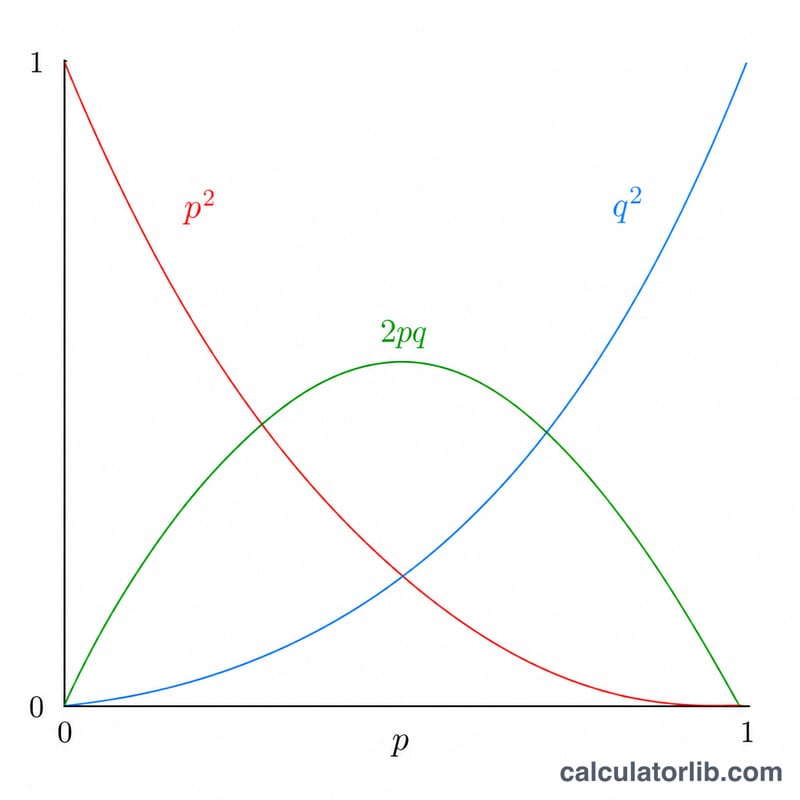
異なる対立遺伝子頻度における遺伝子型頻度
ハーディー・ワインベルグ平衡のもとで、q を劣性対立遺伝子の頻度、p = 1 − q とすると、期待される遺伝子型頻度は \(p^2\)(ホモ接合優性)、\(2pq\)(ヘテロ接合)、\(q^2\)(ホモ接合劣性)です。表には6つのケースを示しています。
| q | p | p² (AA) | 2pq (Aa) | q² (aa) | 合計 |
|---|---|---|---|---|---|
| 0.01 | 0.99 | 0.9801 (98.01%) | 0.0198 (1.98%) | 0.0001 (0.01%) | 1 |
| 0.1 | 0.9 | 0.81 (81%) | 0.18 (18%) | 0.01 (1%) | 1 |
| 0.3 | 0.7 | 0.49 (49%) | 0.42 (42%) | 0.09 (9%) | 1 |
| 0.5 | 0.5 | 0.25 (25%) | 0.50 (50%) | 0.25 (25%) | 1 |
| 0.7 | 0.3 | 0.09 (9%) | 0.42 (42%) | 0.49 (49%) | 1 |
| 0.9 | 0.1 | 0.01 (1%) | 0.18 (18%) | 0.81 (81%) | 1 |
- ヘテロ接合頻度 \(2pq\) は、p = q = 0.5 のときに最大値 0.5 に達します。この値は対称で、q = 0.3 と q = 0.7 の値は同一です。
- まれな劣性対立遺伝子は、主にヘテロ接合体によって保有されています。q = 0.01 のとき、\(q^2 = 0.0001\)(1万人に1人)ですが、\(2pq = 2 × 0.99 × 0.01 = 0.0198\) であり、ホモ接合劣性遺伝子型より約198倍多く存在します。
主な用語と記号
- 対立遺伝子
- ある遺伝子座における、遺伝子の代替型の一つ。
- 優性 / 劣性
- 優性対立遺伝子は、少なくとも1コピーあれば表現型を決定します。劣性対立遺伝子は、2コピーがそろった場合にのみ表現型を示します(完全優性を仮定)。
- ホモ接合
- ある遺伝子座に同一の対立遺伝子を2つ持つこと(AA または aa)。
- ヘテロ接合
- ある遺伝子座に異なる対立遺伝子を2つ持つこと(Aa)。
- 遺伝子型 対 表現型
- 遺伝子型とは、個体が保有する対立遺伝子の組み合わせです。表現型とは、遺伝子型から、そして多くの場合は環境によって生じる、観察可能な形質です。
- 対立遺伝子頻度
- 集団内のある遺伝子のすべてのコピーのうち、特定の対立遺伝子が占める割合(0から1までの値)。
- 遺伝子型頻度
- 集団内で、特定の遺伝子型を持つ個体の割合。
- 保因者
- 劣性対立遺伝子を1コピー持つヘテロ接合の個体で、通常は劣性の表現型を示しません。
- 遺伝子プール
- 繁殖集団におけるすべての遺伝子座の対立遺伝子の全体。
- p
- 優性対立遺伝子(A)の頻度。p = 1 − q。
- q
- 劣性対立遺伝子(a)の頻度。q = 1 − p。
- p²
- ホモ接合優性(AA)個体の期待頻度。
- 2pq
- ヘテロ接合(Aa)個体の期待頻度。
- q²
- ホモ接合劣性(aa)個体の期待頻度。
結果の解釈
この計算機は、入力された対立遺伝子頻度についてハーディー・ワインベルグ平衡が成り立つと仮定した場合の、期待される遺伝子型頻度を出力します。これらはモデルから導かれた予測値であり、測定値ではありません。\(p^2 + 2pq + q^2 = (p+q)^2 = 1\) であるため、3つの値の合計は常に1になります。
観測データとの比較
実際の集団がモデルに適合するかどうかを検定するには、各期待頻度に標本サイズ N を掛けて期待度数を求め、観測度数と比較します。一般に、カイ二乗適合度検定が用いられます。
$$\chi^2 = \sum \frac{(O - E)^2}{E}$$
遺伝子型の区分が3つあり、データから対立遺伝子頻度を1つ推定する場合、自由度は1(3 − 1 − 1)です。χ² の値が 3.84 を超えると p < 0.05 に対応し、平衡からの有意なずれが示唆されます。
ずれの原因となりうるもの
- 選択: 遺伝子型によって生存または繁殖の成功度が異なる。
- 突然変異: 新たな対立遺伝子が生じたり、対立遺伝子の形が変化したりして、頻度が変わる。
- 移住(遺伝子流動): 異なる頻度の集団から個体が対立遺伝子を持ち込む。
- 遺伝的浮動: 対立遺伝子頻度のランダムな変動で、小集団で最も強く生じる。
- 非ランダム交配: 近親交配や選択的交配は遺伝子型頻度を変化させ、一般にホモ接合体を増加させますが、必ずしも対立遺伝子頻度を変化させるわけではありません。
モデルの限界
基本モデルは、大規模でランダムに交配する集団における、2つの対立遺伝子を持つ単一の遺伝子座を扱います。選択、突然変異、移住がないことを仮定しています。どのような遺伝子型頻度からスタートしても、ランダム交配を1世代行えば平衡の遺伝子型比率に達します。仮定が成り立つ場合、対立遺伝子頻度は世代を超えて一定に保たれます。なお、この計算機は期待値のみを示すものであり、実際のデータセットを検定するものではありません。
よくある質問
発症している個体の人数しかわからない場合は? 劣性形質は \(q^2\) に対応します。発症者数を集団の総数で割って \(q^2\) を求め、その平方根をとって \(q\) を計算し、その値を入力してください。
なぜ遺伝子型頻度の合計が1になるの? これらは集団内で起こりうるすべての遺伝子型の組み合わせを表しているため、その割合の合計は必ず全個体の100%をカバーするからです。
保因者(キャリア)はヘテロ接合体のことですか? はい。劣性形質の場合、保因者は優性と劣性の対立遺伝子を1つずつもつ個体であり、これが \(2pq\) のグループにあたります。